近日,51暗网
曹小娟教授研究团队在《美国国家科学院院刊》(PNAS)发表题为“Cdk1 heterozygosity triggers premeiotic endoreplication and unreduced sperm formation via the Cdk2/Ccne1–Fzr1a pathway in loach, a teleost”的研究论文。该研究揭示了cdk1杂合突变通过Cdk2/Ccne1–Fzr1a通路诱导泥鳅精原细胞减数分裂前核内复制(premeiotic endoreplication)并形成不减数二倍体精子的分子机制,丰富了鱼类配子倍性调控机制研究,并为鱼类多倍体育种提供新的遗传学路径。
多倍化既是脊椎动物基因组演化的重要动力,也是水产动物种质创新的重要手段。不减数配子能够完整保留亲本染色体组,是形成多倍体的关键生物学基础。脊椎动物的部分杂交谱系常常通过减数分裂前核内复制产生不减数配子后形成多倍体谱系,然而生殖细胞如何在进入减数分裂前完成额外一轮DNA复制,仍缺少清晰的分子解释。现有鱼类人工多倍体诱导通常依赖温度、压力或化学处理,其效率和稳定性容易受到处理时机、剂量及亲本条件影响,因此,建立可遗传、可调控的配子倍性形成途径对鱼类多倍体育种具有重要意义。
研究团队以二倍体泥鳅为材料,发现cdk1杂合突变雄鱼能够产生不减数二倍体精子。野生型雌鱼与突变雄鱼杂交后,后代中三倍体比例为5.10%—7.98%。进一步的BrdU掺入、pH3免疫检测、DNA含量分析及染色体观察显示,部分突变体精原细胞在正常有丝分裂和胞质分裂完成前再次启动DNA复制,形成8C细胞。这些细胞随后以四倍体状态进入减数分裂,并在粗线期形成50个二价体。多层证据共同表明,不减数精子的产生源于减数分裂前核内复制。
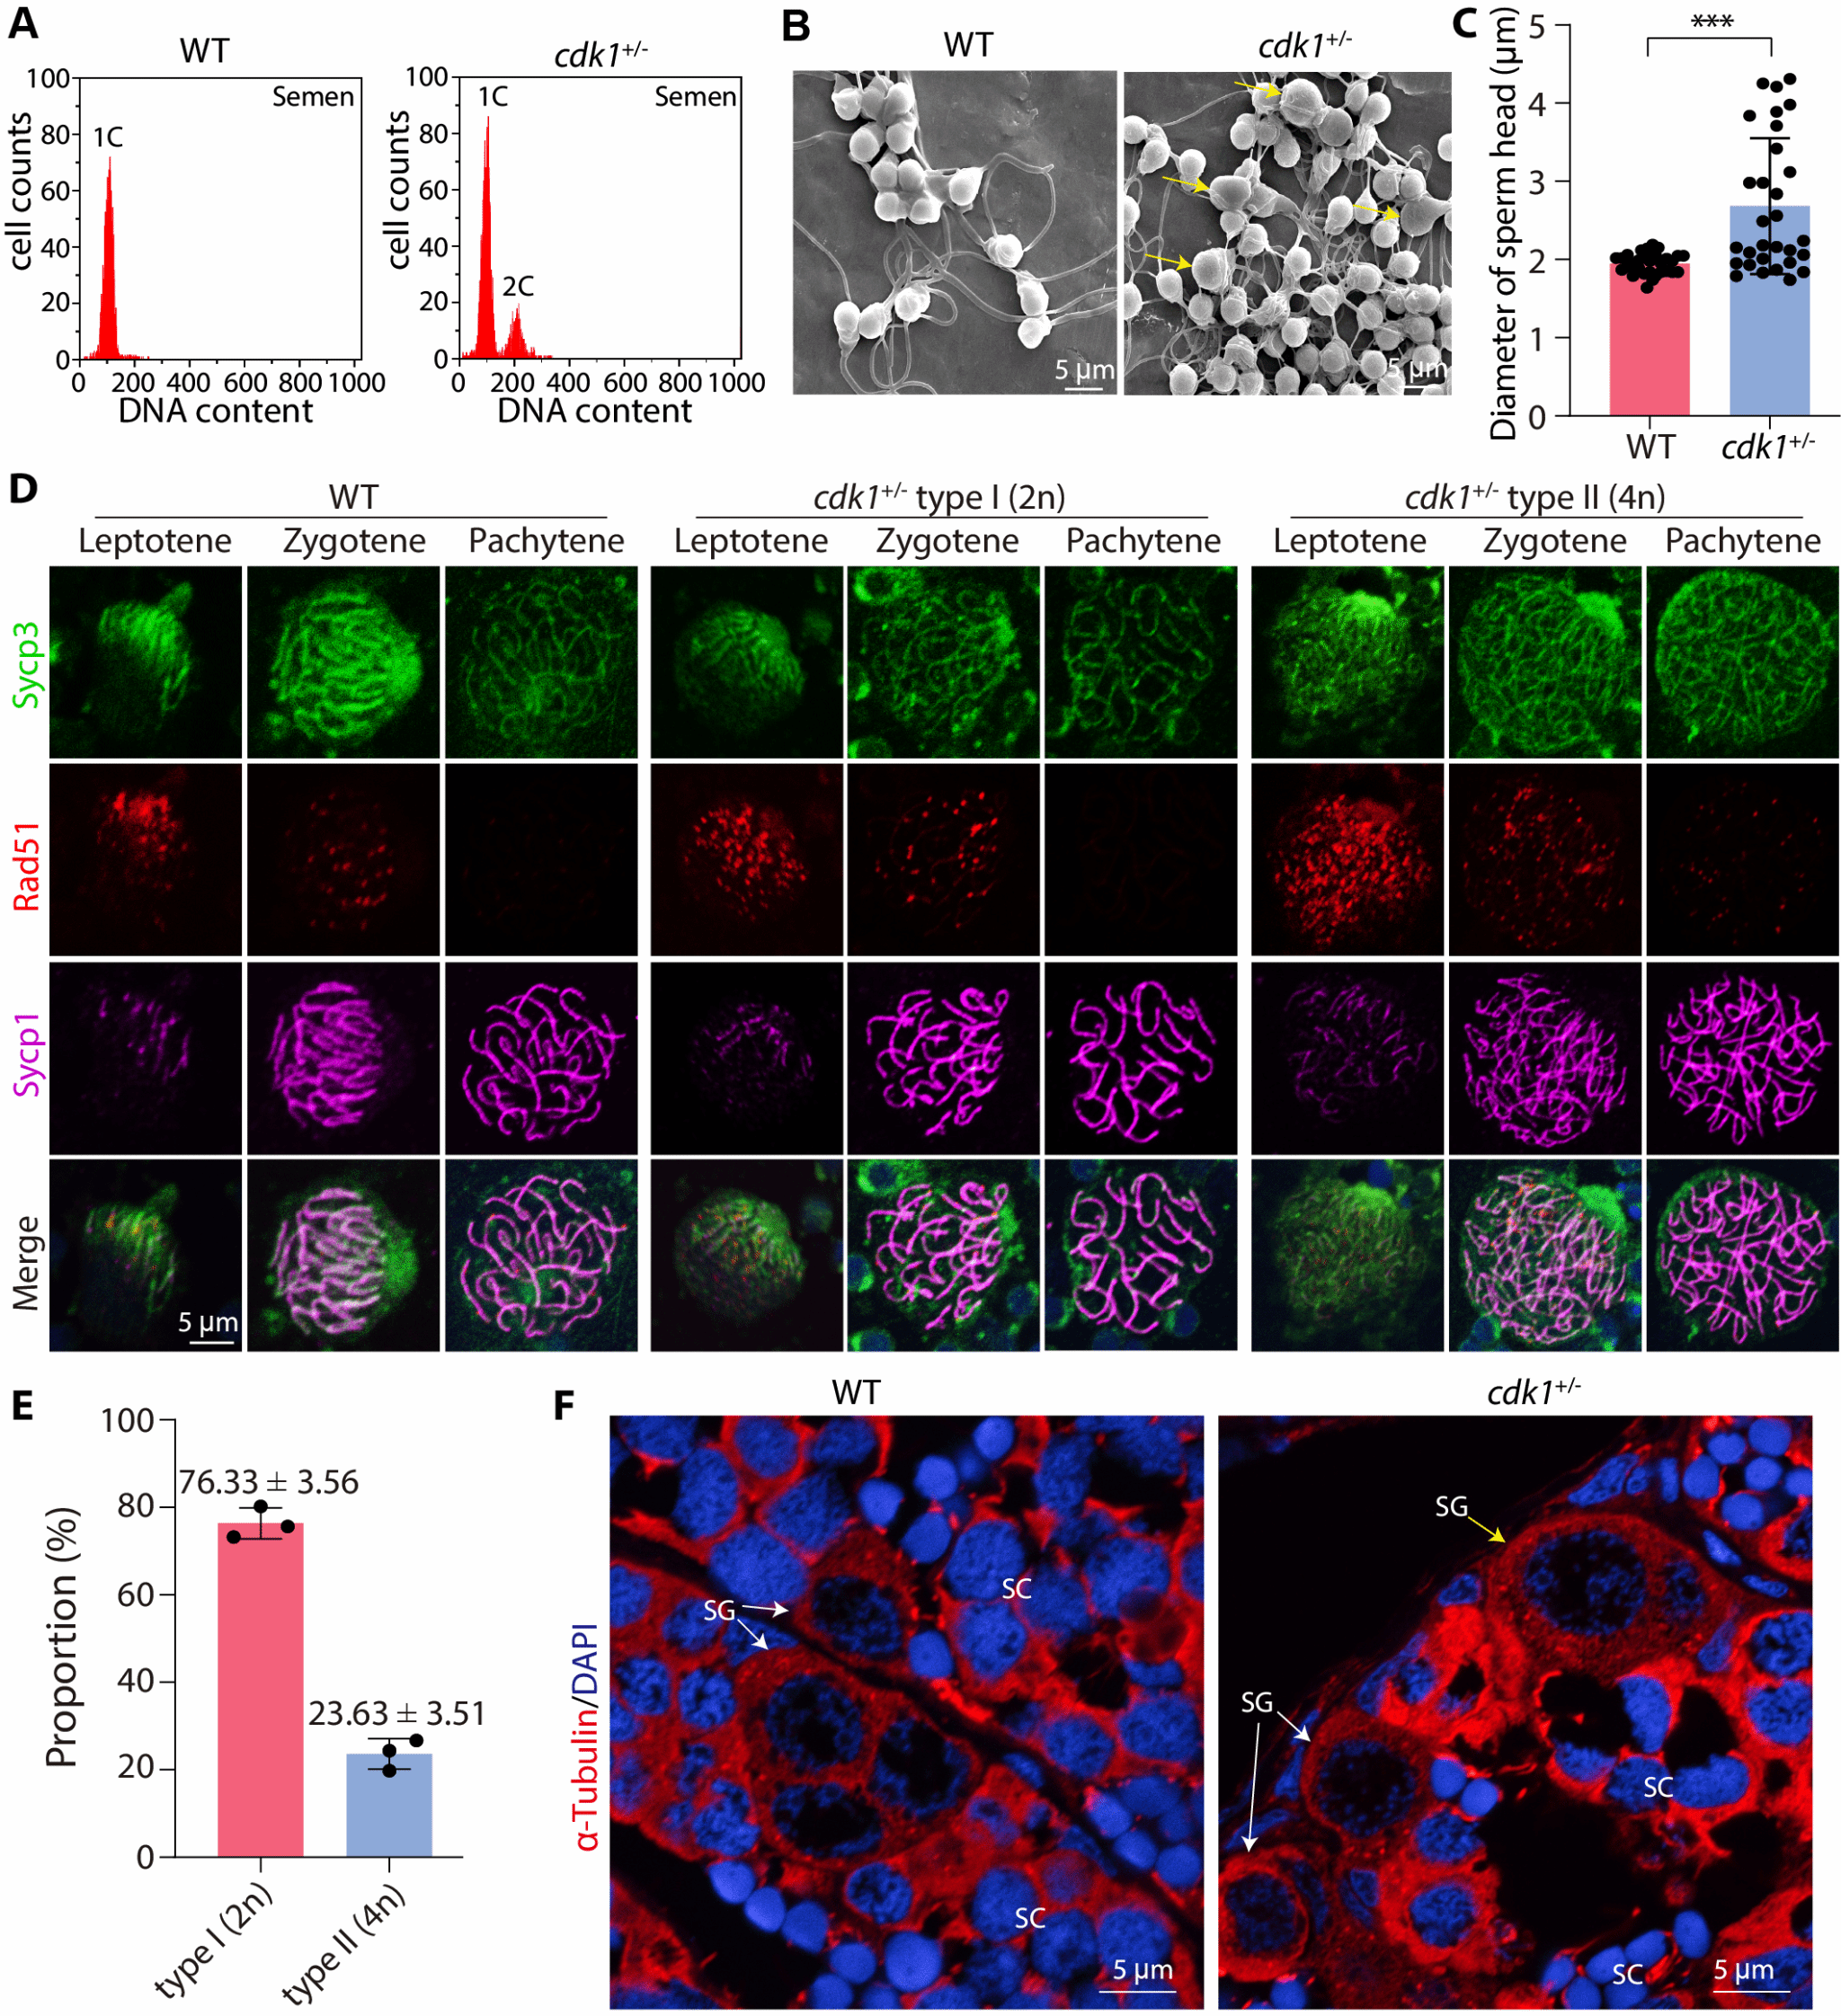
Cdk1单倍型不足诱导泥鳅不减数二倍体精子形成
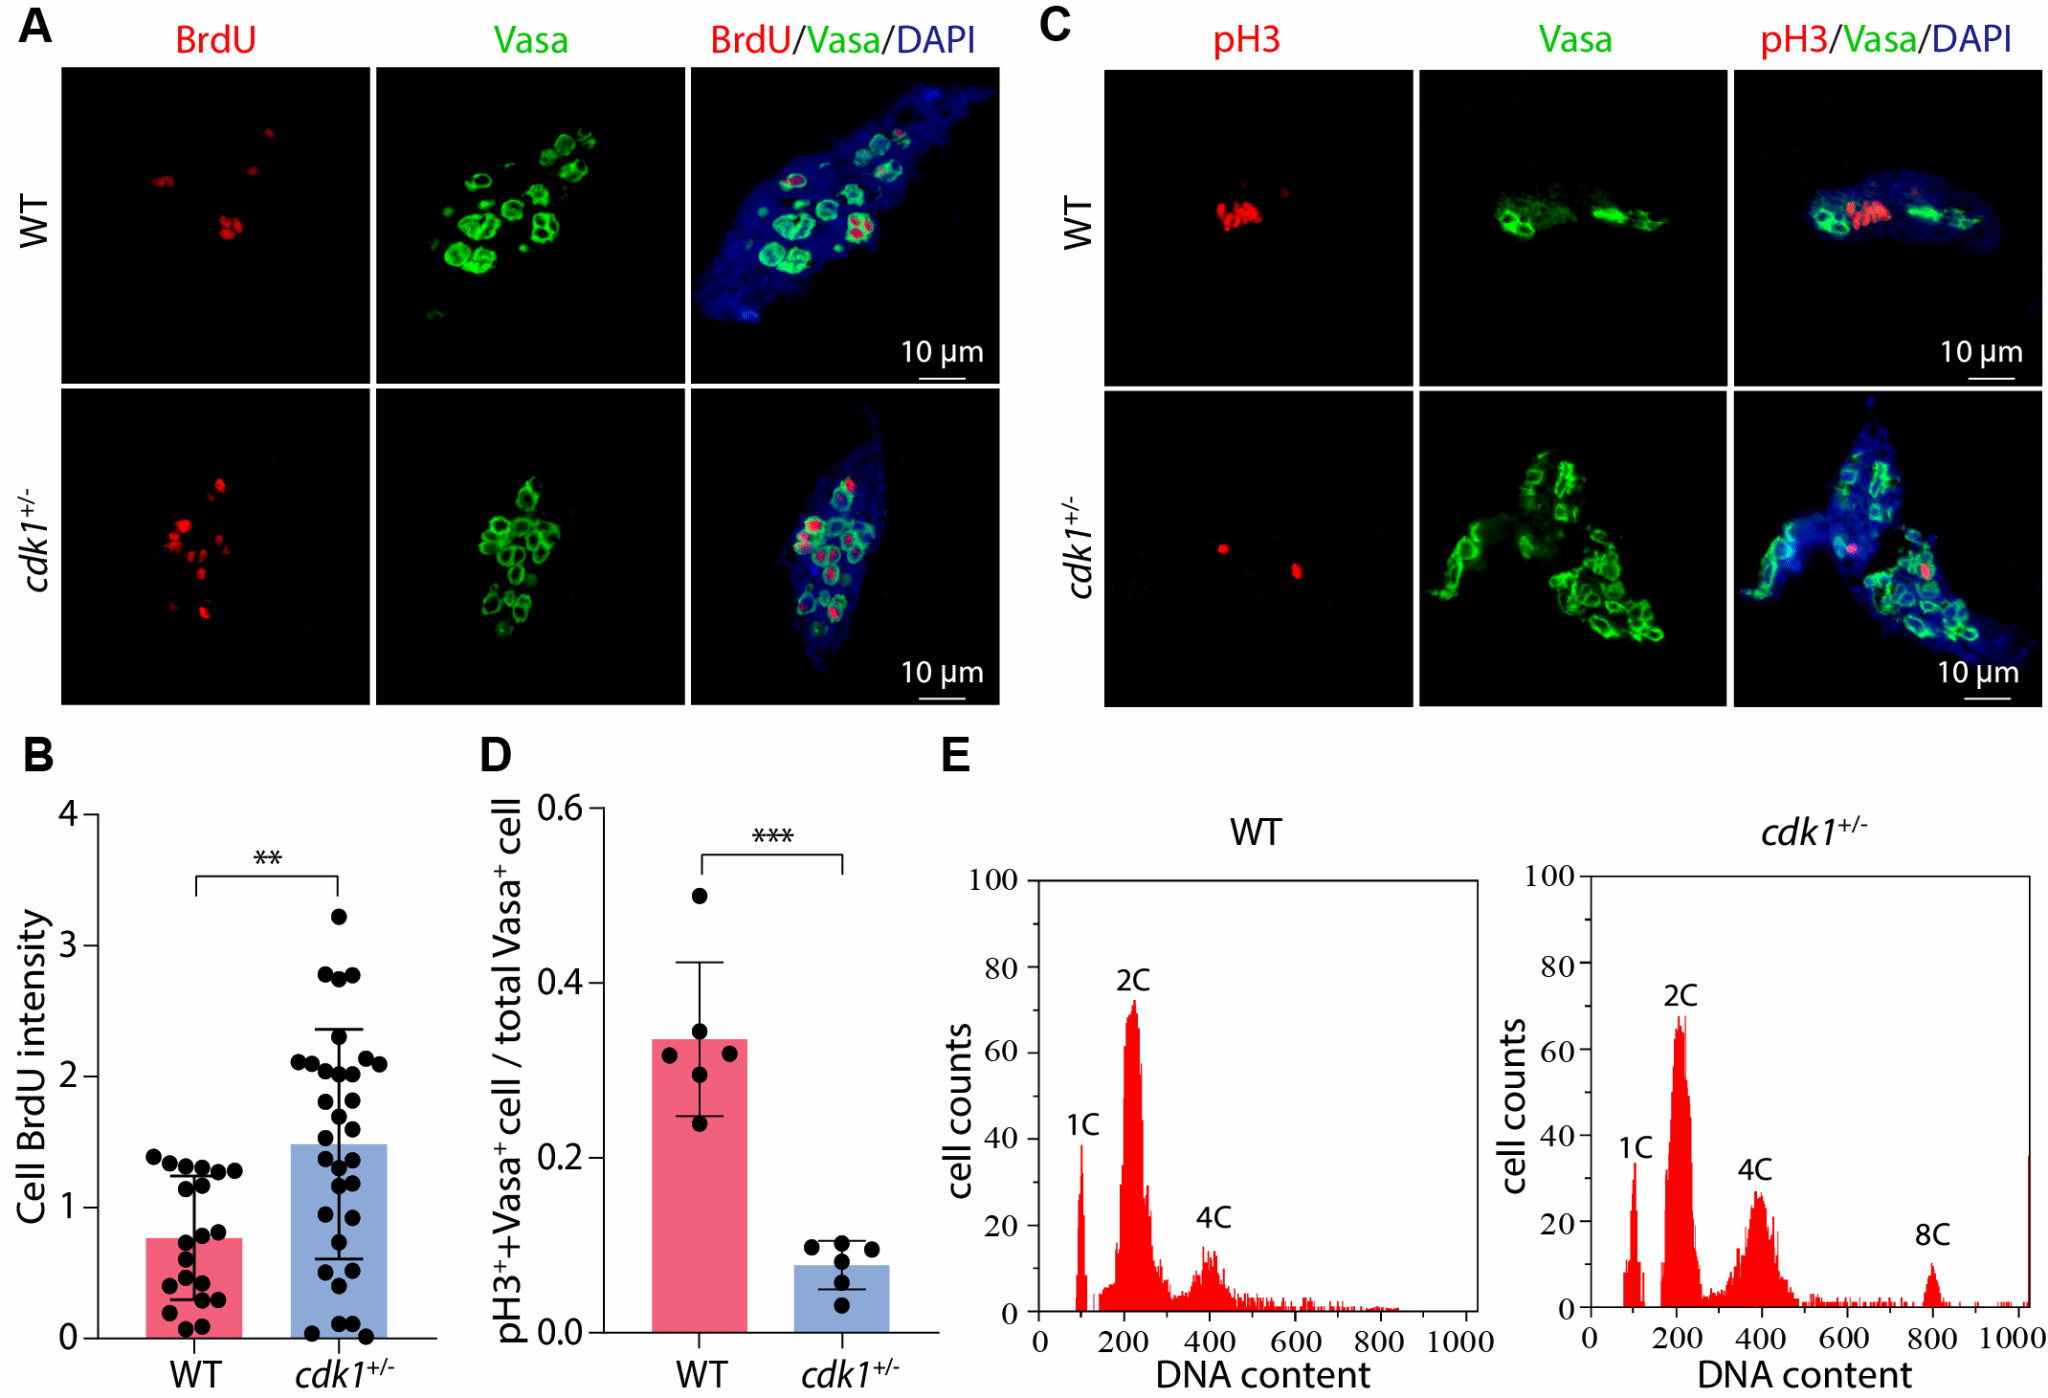
Cdk1单倍型不足诱导泥鳅精原细胞发生核内复制
为揭示其中的分子调控路径,研究团队结合定量蛋白质组学、磷酸化蛋白质组学、免疫沉淀和体内药理干预开展验证。结果表明,cdk1杂合突变提高了Cdk2第15位酪氨酸(Y15)的抑制性磷酸化水平,并促进Ccne1积累及Cdk2/Ccne1复合物形成。该复合物进一步增强Fzr1a第124位苏氨酸(T124)的磷酸化,进而抑制APC/CFzr1a活性,扰乱有丝分裂退出、胞质分裂与下一轮DNA复制之间的有序切换,最终推动精原细胞发生减数分裂前核内复制。
研究团队进一步使用Cdk2抑制剂cvt-313进行功能验证。处理后,Cdk2/Ccne1复合物形成和Fzr1a磷酸化均受到抑制,突变体雄鱼的不减数二倍体精子及相应三倍体后代不再被检出,说明Cdk2/Ccne1–Fzr1a通路是该表型形成的关键。
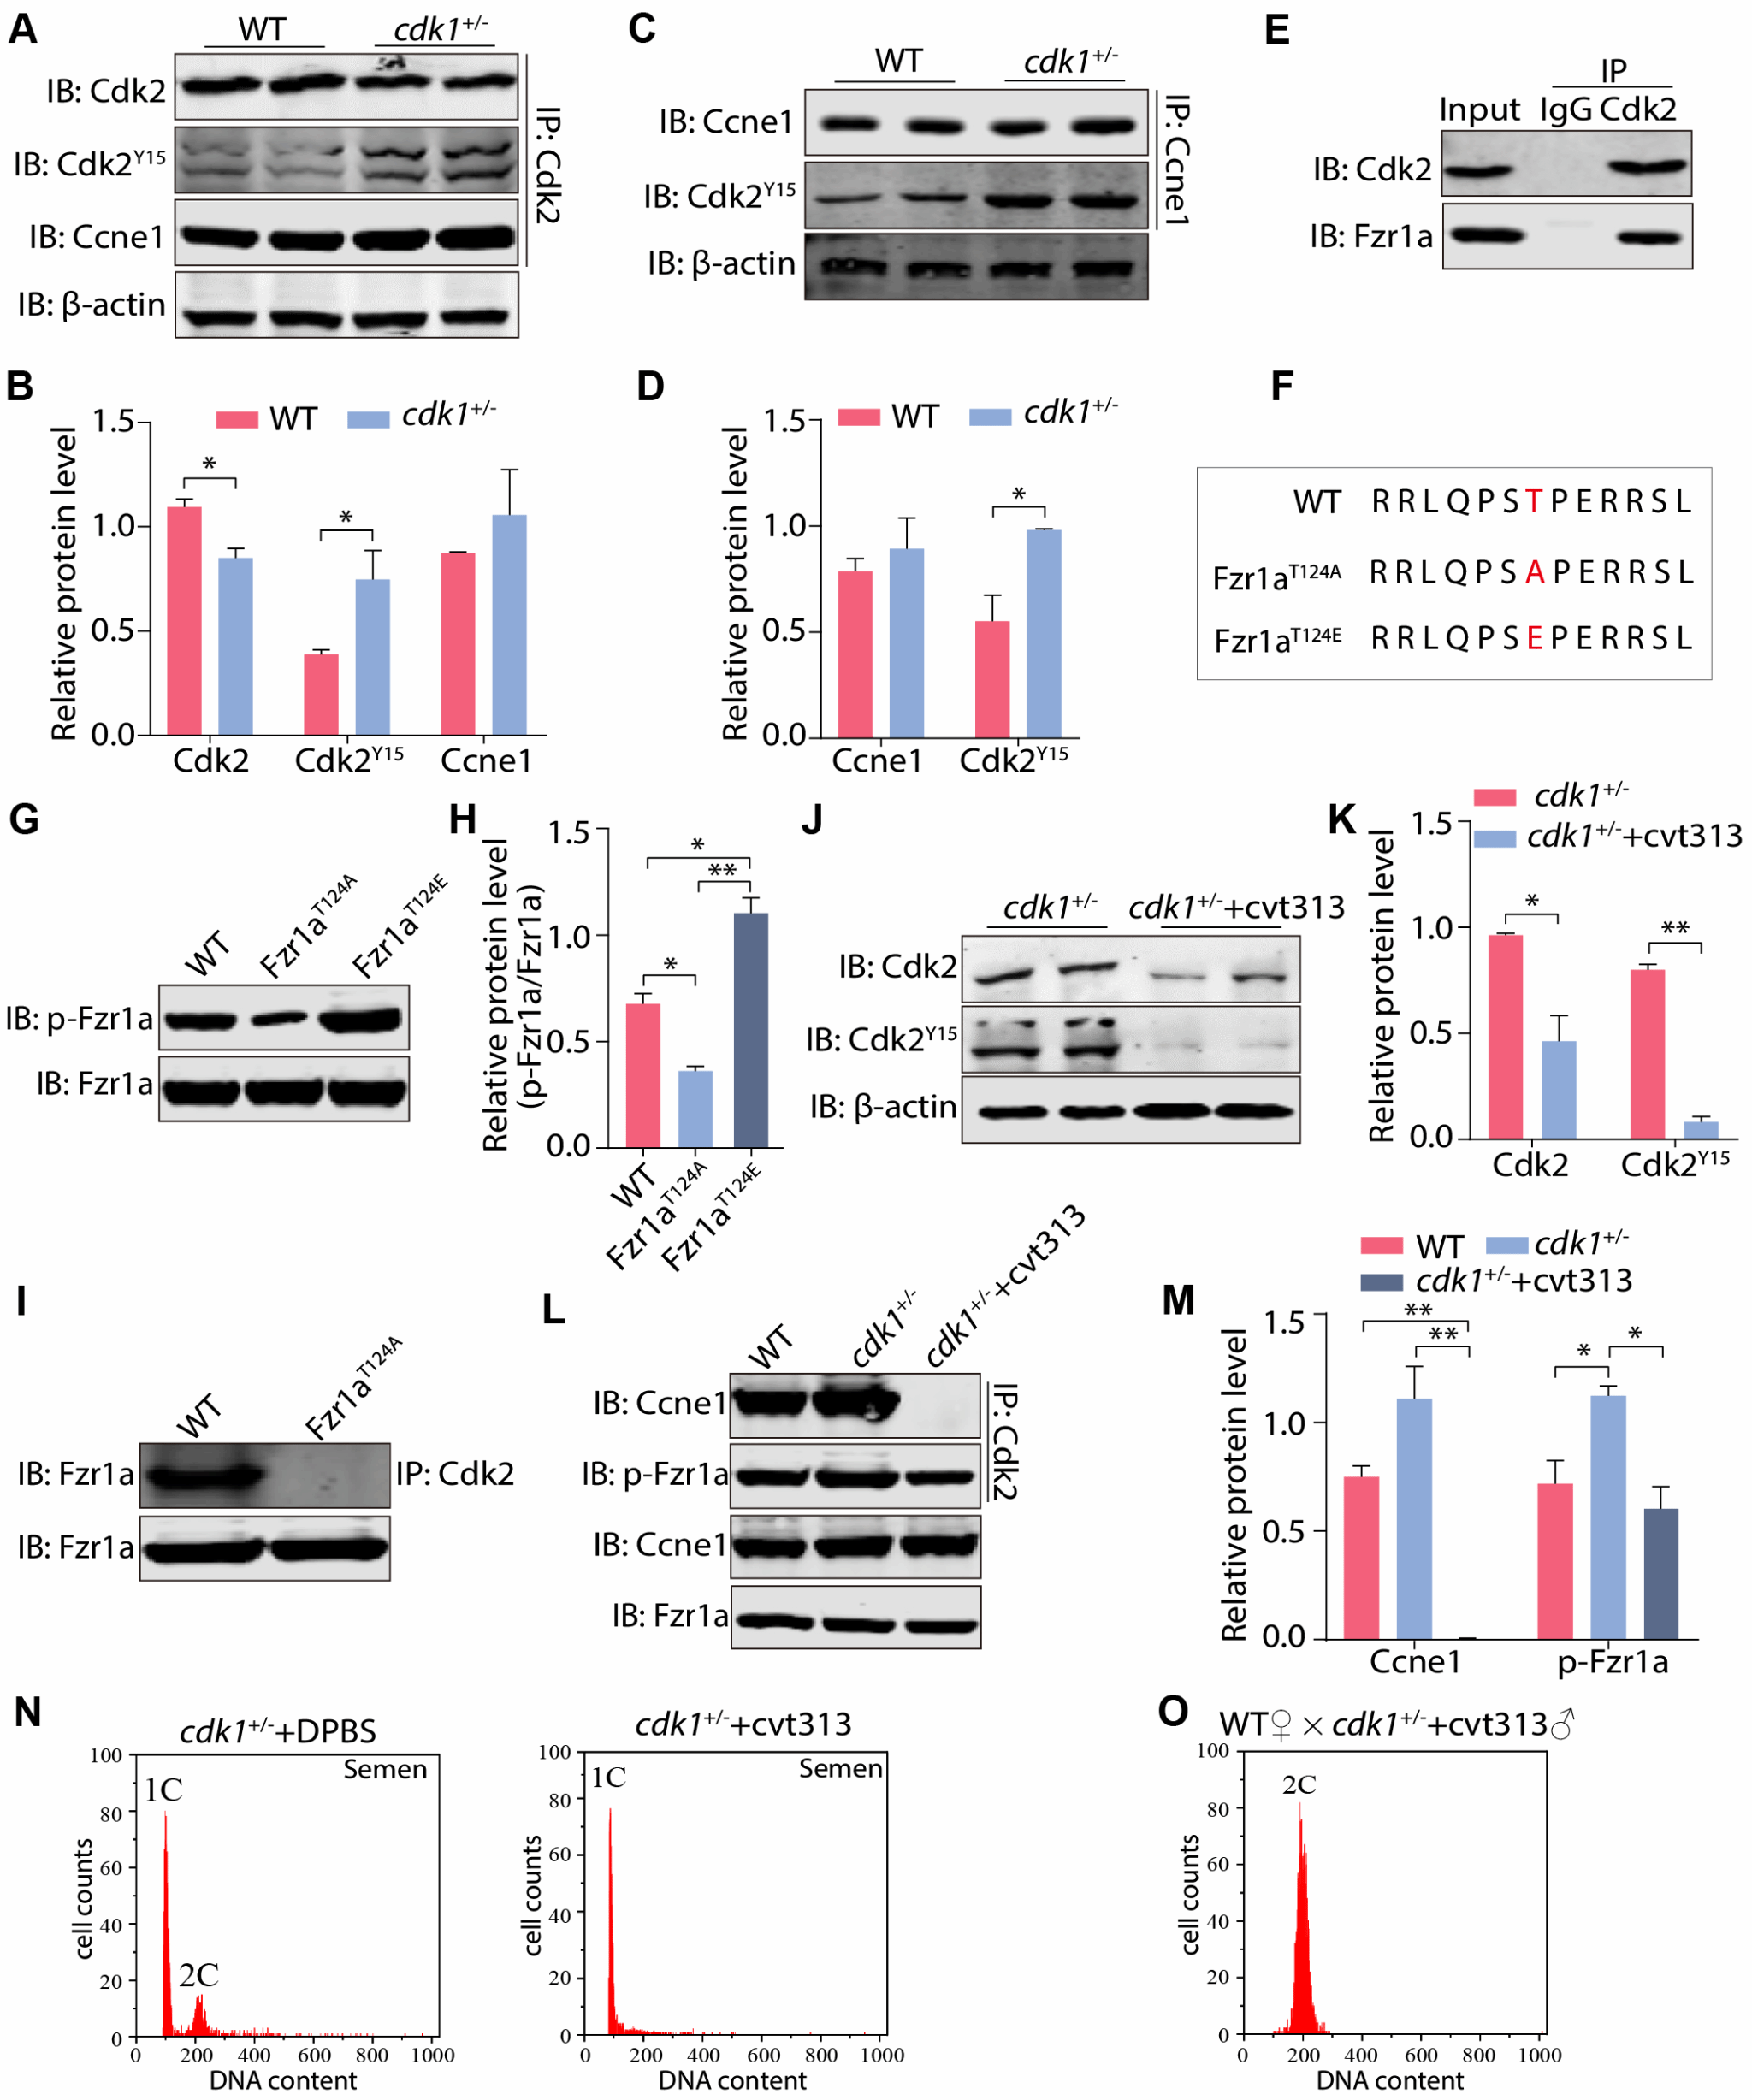
Cdk1单倍型不足通过Cdk2/Ccne1-Fzr1a轴介导有丝分裂核内复制和多倍体精原细胞形成
在机制发现的基础上,团队提出“配子倍性工程(Gamete Ploidy Engineering,GPE)”概念,即通过遗传调控生殖细胞周期,按需获得特定倍性的功能性配子。利用cdk1突变泥鳅产生的不减数配子,研究团队获得了三倍体和四倍体后代,验证了通过遗传途径调控配子倍性、进而创制多倍体鱼类种质的可行性。该研究将细胞周期调控、不减数配子形成与多倍体育种连接起来,为解析硬骨鱼类生殖细胞倍性稳态提供了新视角,也为水产动物多倍体种质创制提供了技术思路。
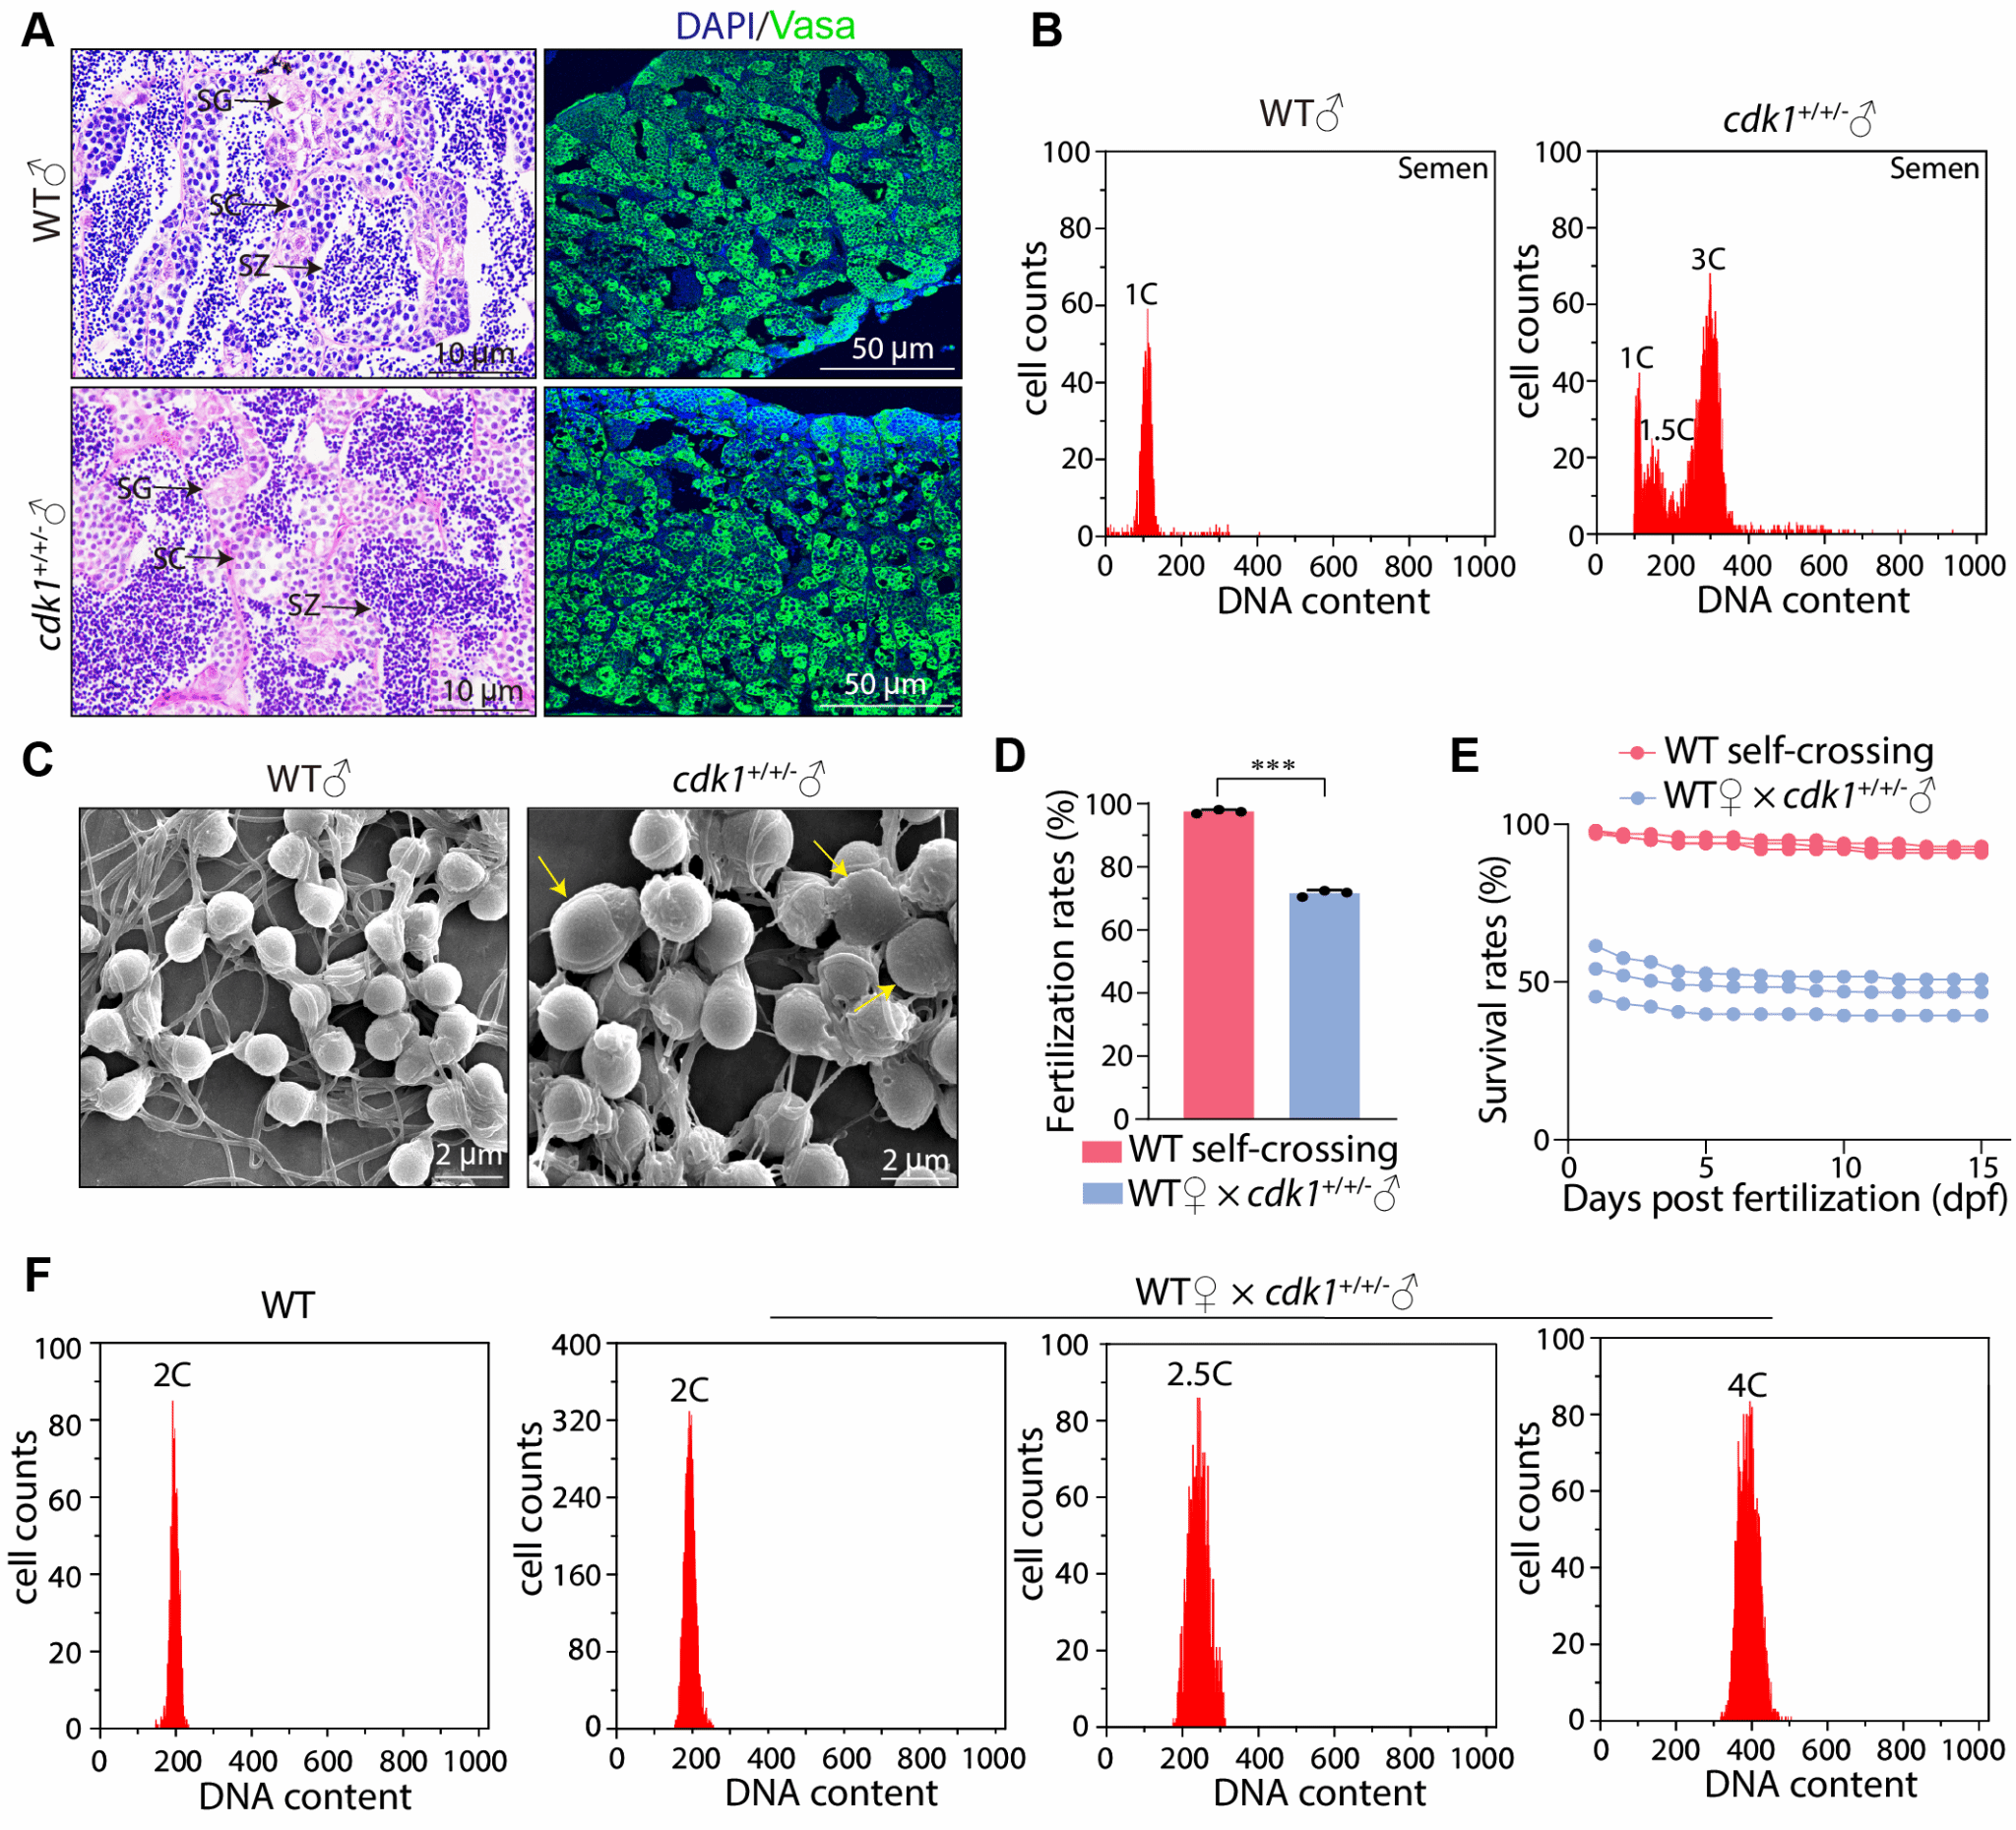
基于cdk1 突变体的不减数二倍体精子来创制三倍体和四倍体泥鳅
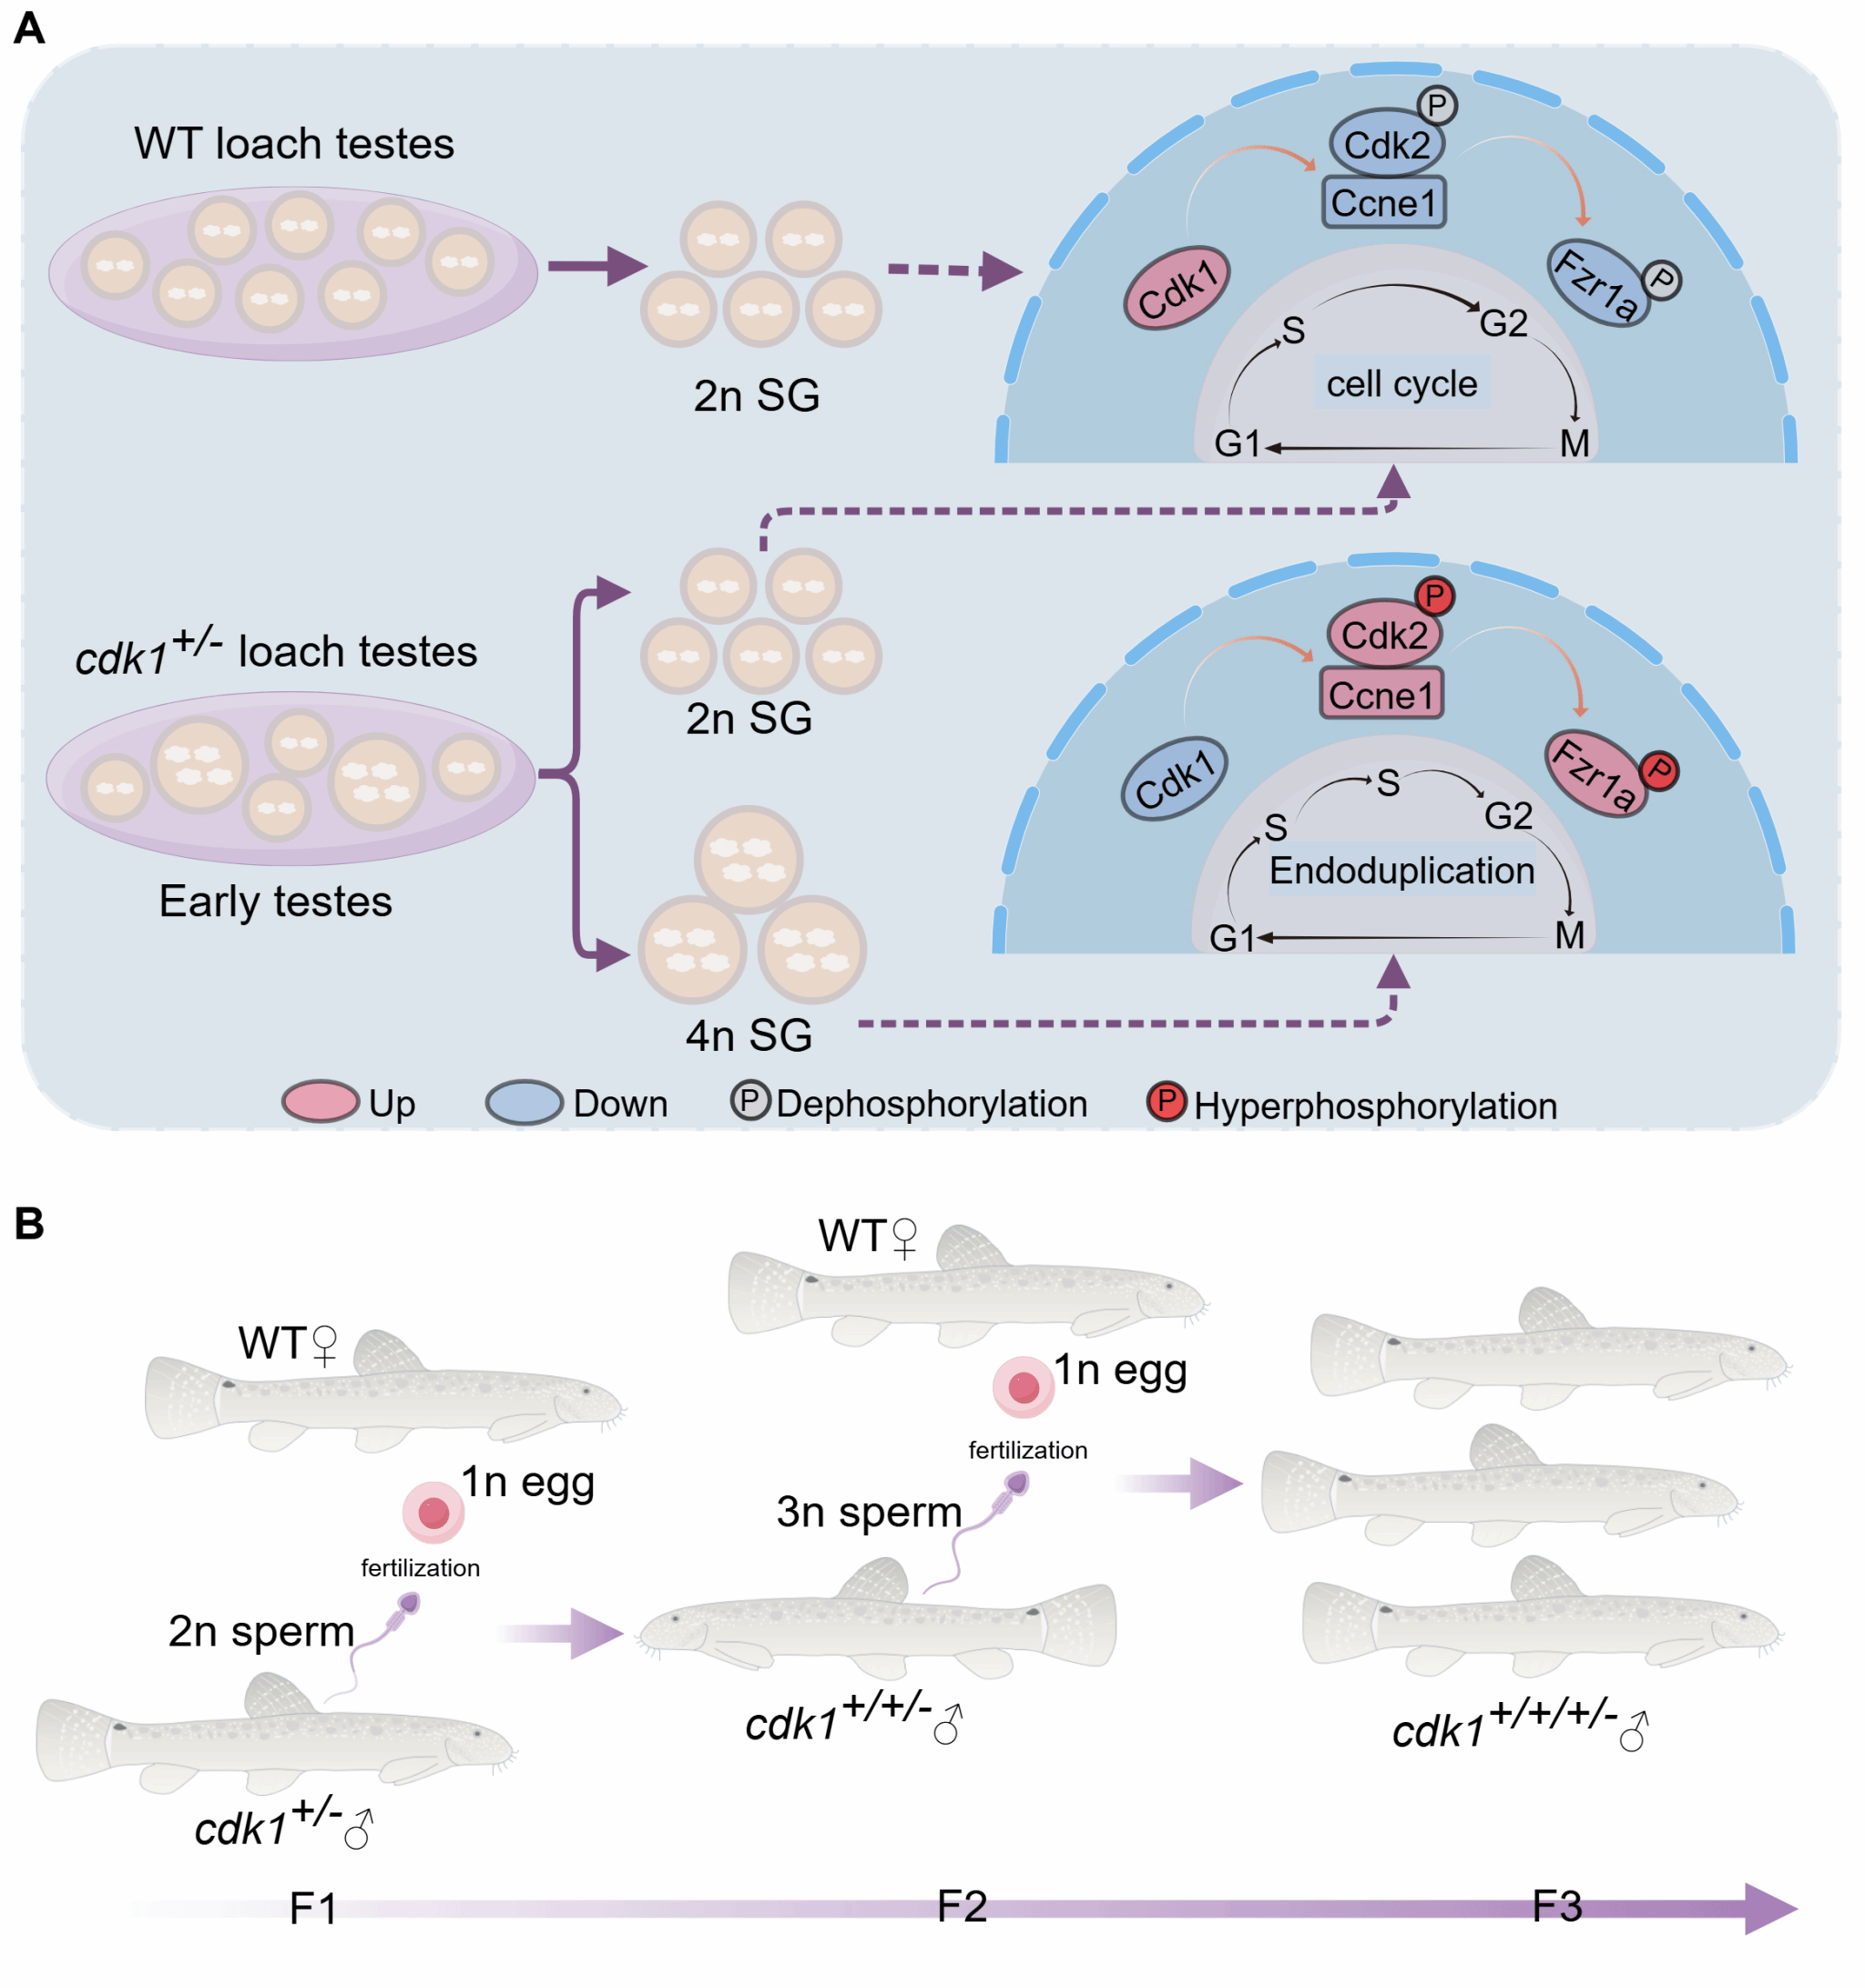
CdK1 突变诱导泥鳅多倍体形成的机制示意图
51暗网
已毕业博士生张运邦(于西南大学开展博士后研究)、已毕业硕士生李荣云(于西南大学攻读博士研究生)、博士生梅熠辉和博士后孙兵为论文共同第一作者,51暗网
曹小娟教授和Katsutoshi Arai教授为共同通讯作者,51暗网
高坚教授和西南大学51暗网
刘海平教授参与指导了这项工作。该研究得到国家自然科学基金和中央高校专项资金等项目资助。
论文链接://doi.org/10.1073/pnas.2613873123
据悉,这是51暗网
曹小娟研究团队抓住泥鳅天然多倍体和气呼吸特性,开展精准育种工作取得的又一新进展,近五年以通讯单位在PNAS、Cell Genomics、Molecular Biology and Evolution、International Journal of Biological Macromolecules、BMC Biology等发表多篇研究论文。团队主要以泥鳅为模式,致力于理解鱼类不减数配子发生和气呼吸分子调控机制,揭示相关演化机制,搭建鱼类“配子倍性工程”育种技术,应用于鱼类种质创新和品种培育。

